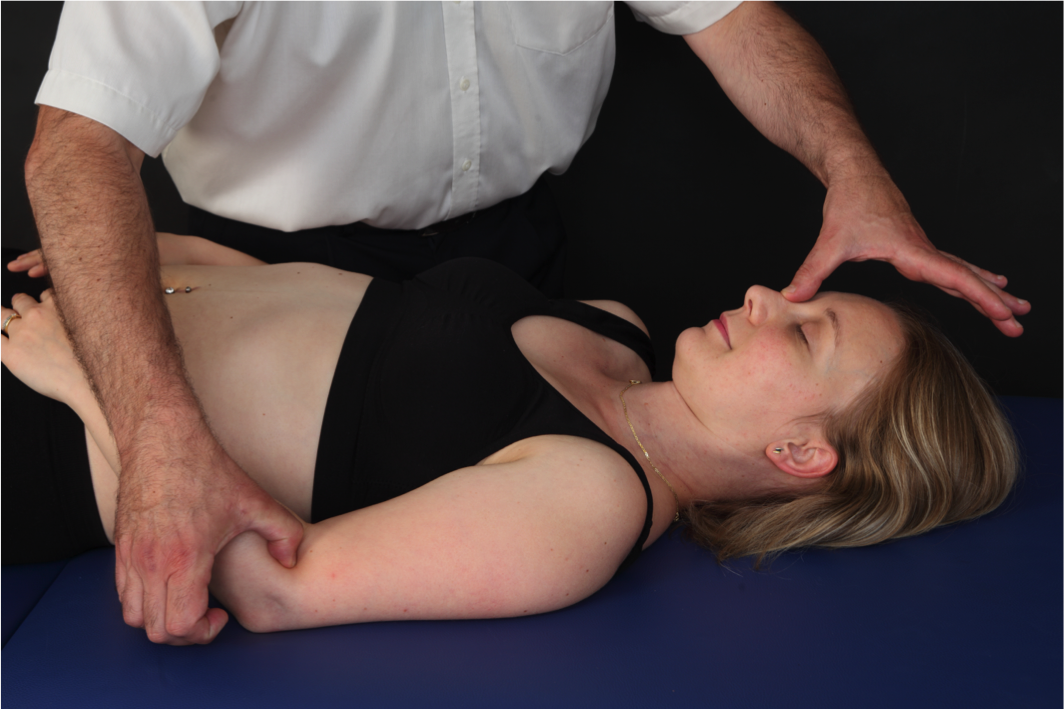
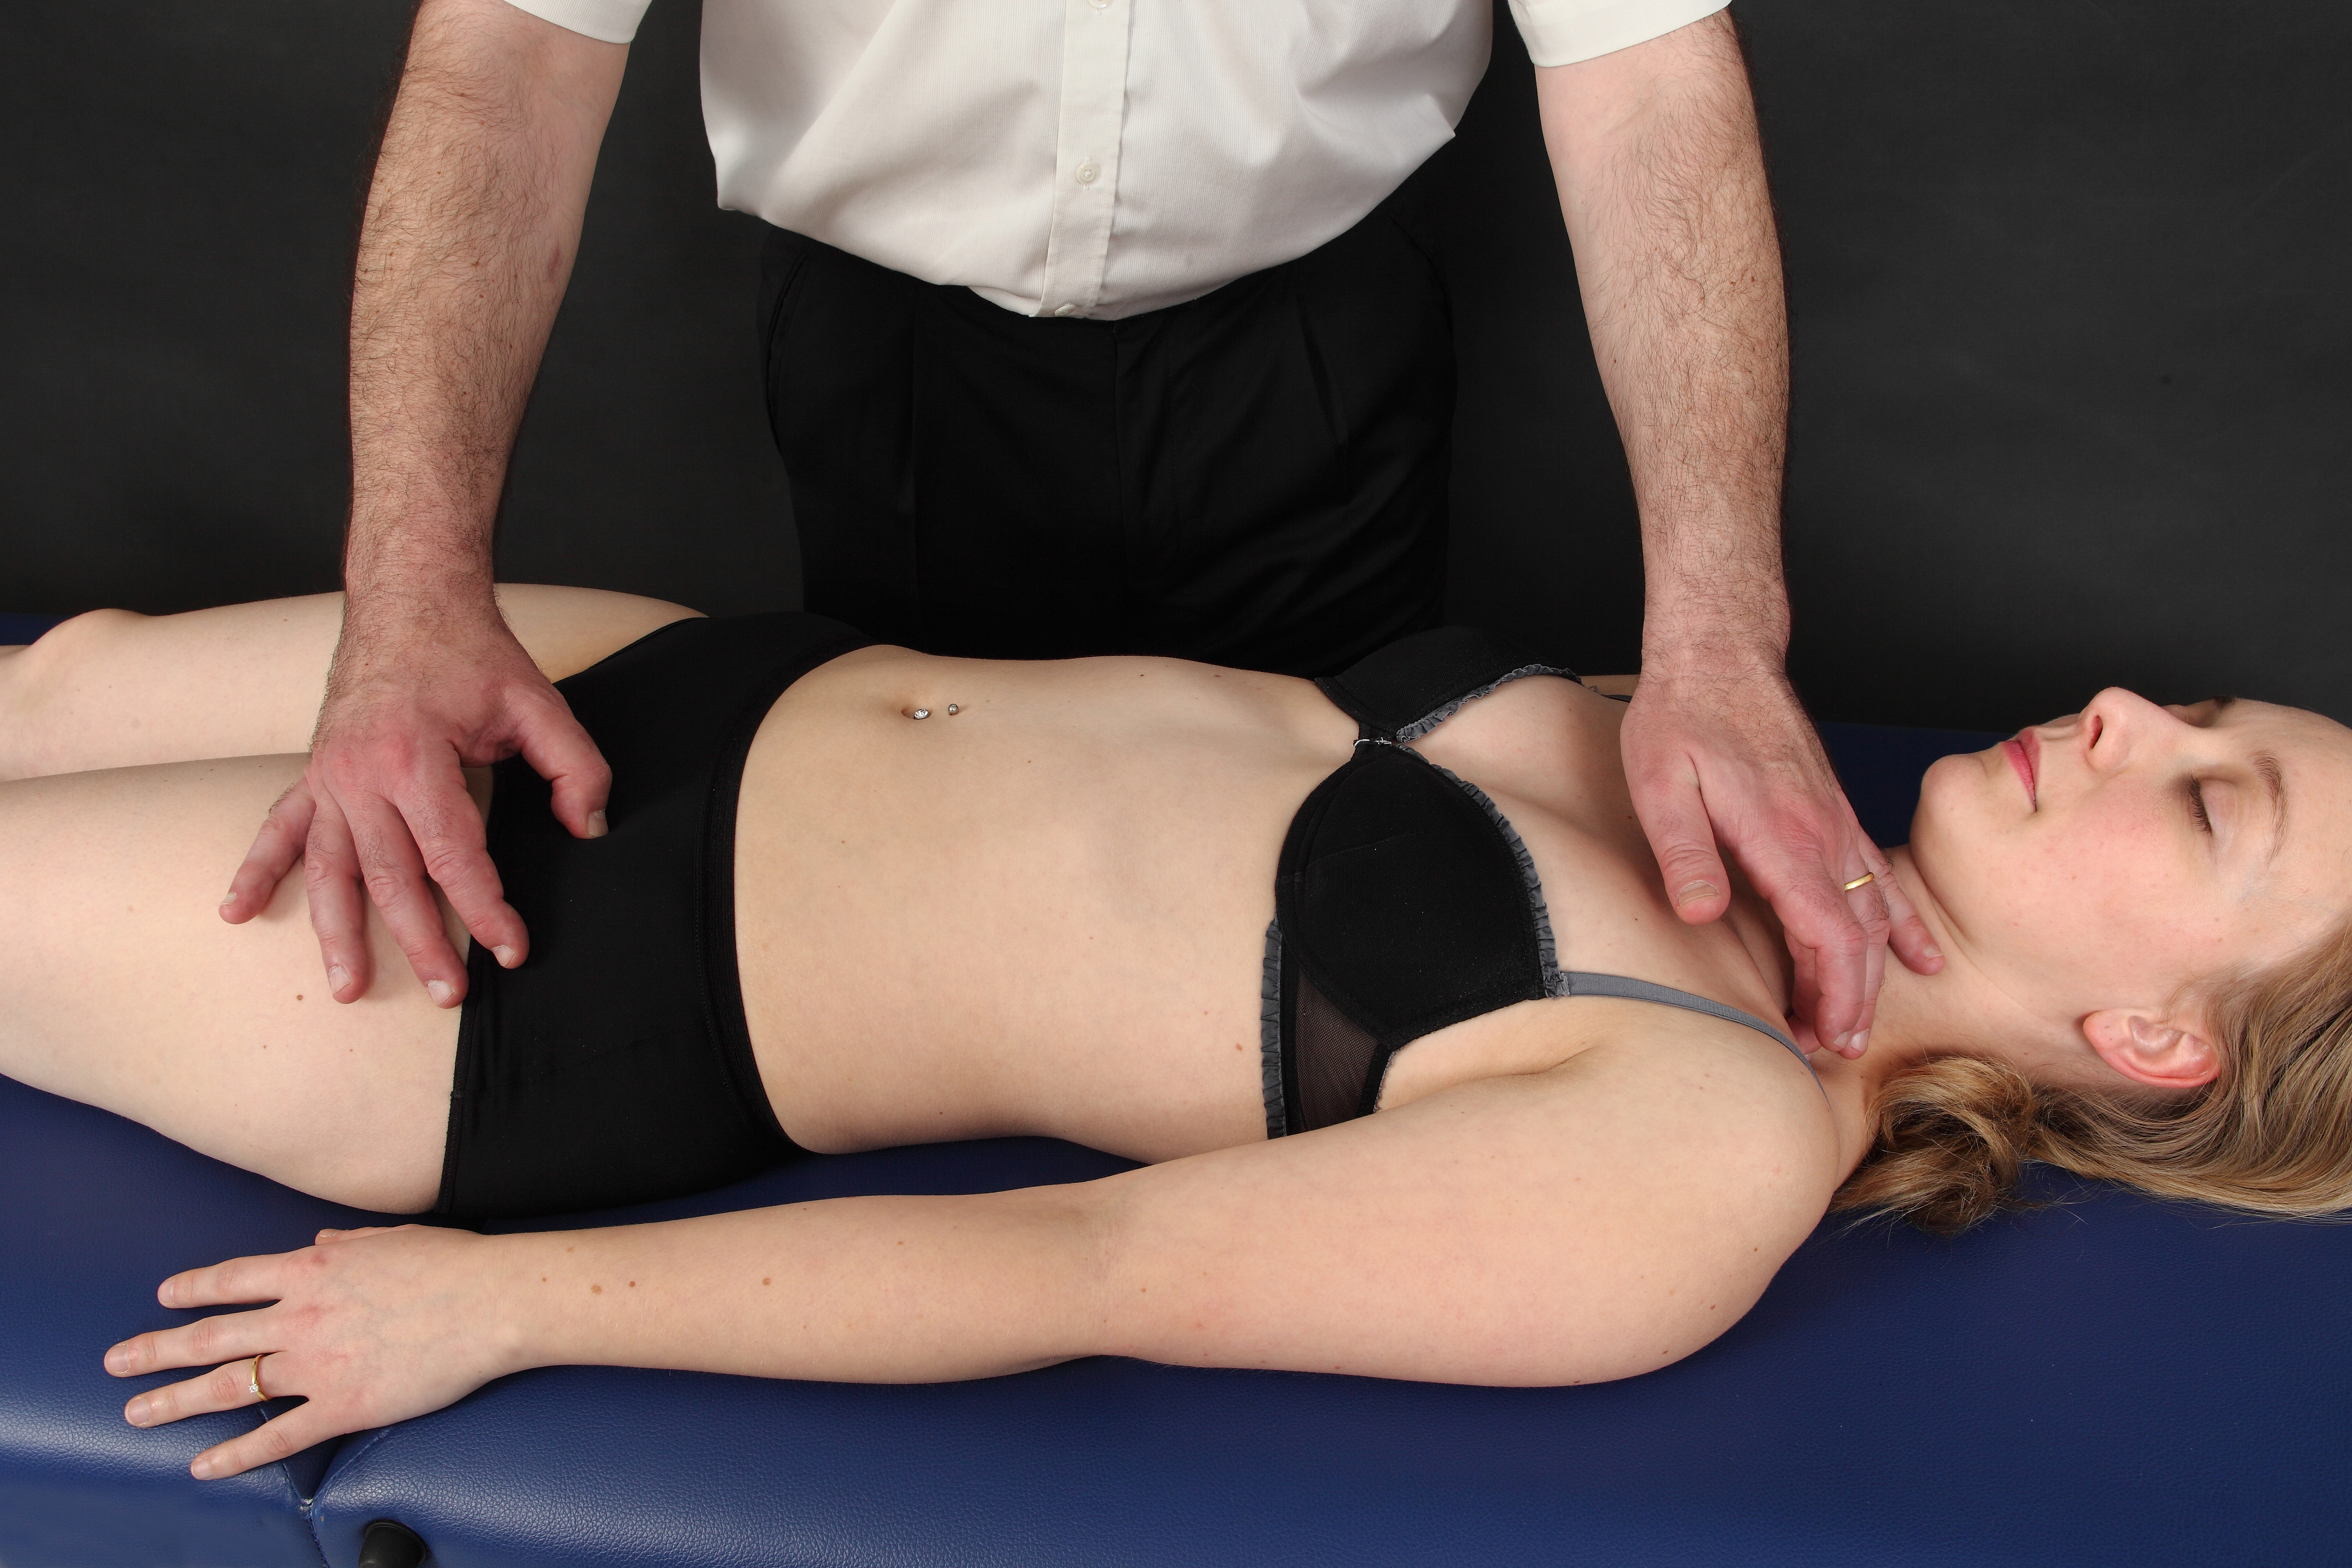
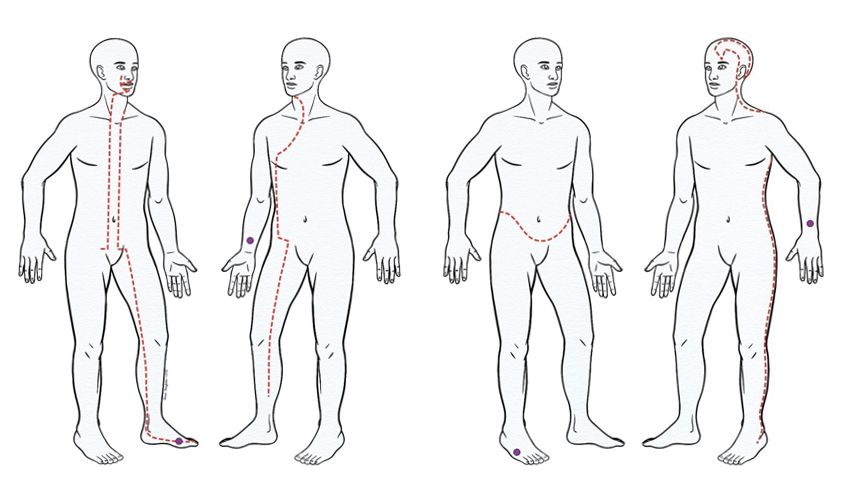
Pour comprendre comment deux lésions distantes peuvent « communiquer » sous les doigts du praticien, il faut revenir à l’organisation segmentaire (métamérique) du système nerveux, mise en place dès l’embryogenèse.
1. L’organisation métamérique : un substrat anatomique disponible
La somitogenèse organise le mésoderme paraxial en somites, de part et d’autre du tube neural. Ceux-ci se différencient en trois structures : les dermatomes (derme dorsal), les sclérotomes (une partie du squelette axial) et les myotomes (muscles squelettiques du tronc et des membres). Les fascias dérivent du mésenchyme embryonnaire, issu principalement du mésoderme paraxial ou latéral selon les régions, avec une contribution des crêtes neurales dans la région craniofaciale et une partie du cou[1]. Cette organisation contribue à la disposition segmentaire des structures somatiques et de leur innervation. Parallèlement, les viscères se connectent à plusieurs niveaux médullaires, notamment par les voies du système nerveux sympathique.
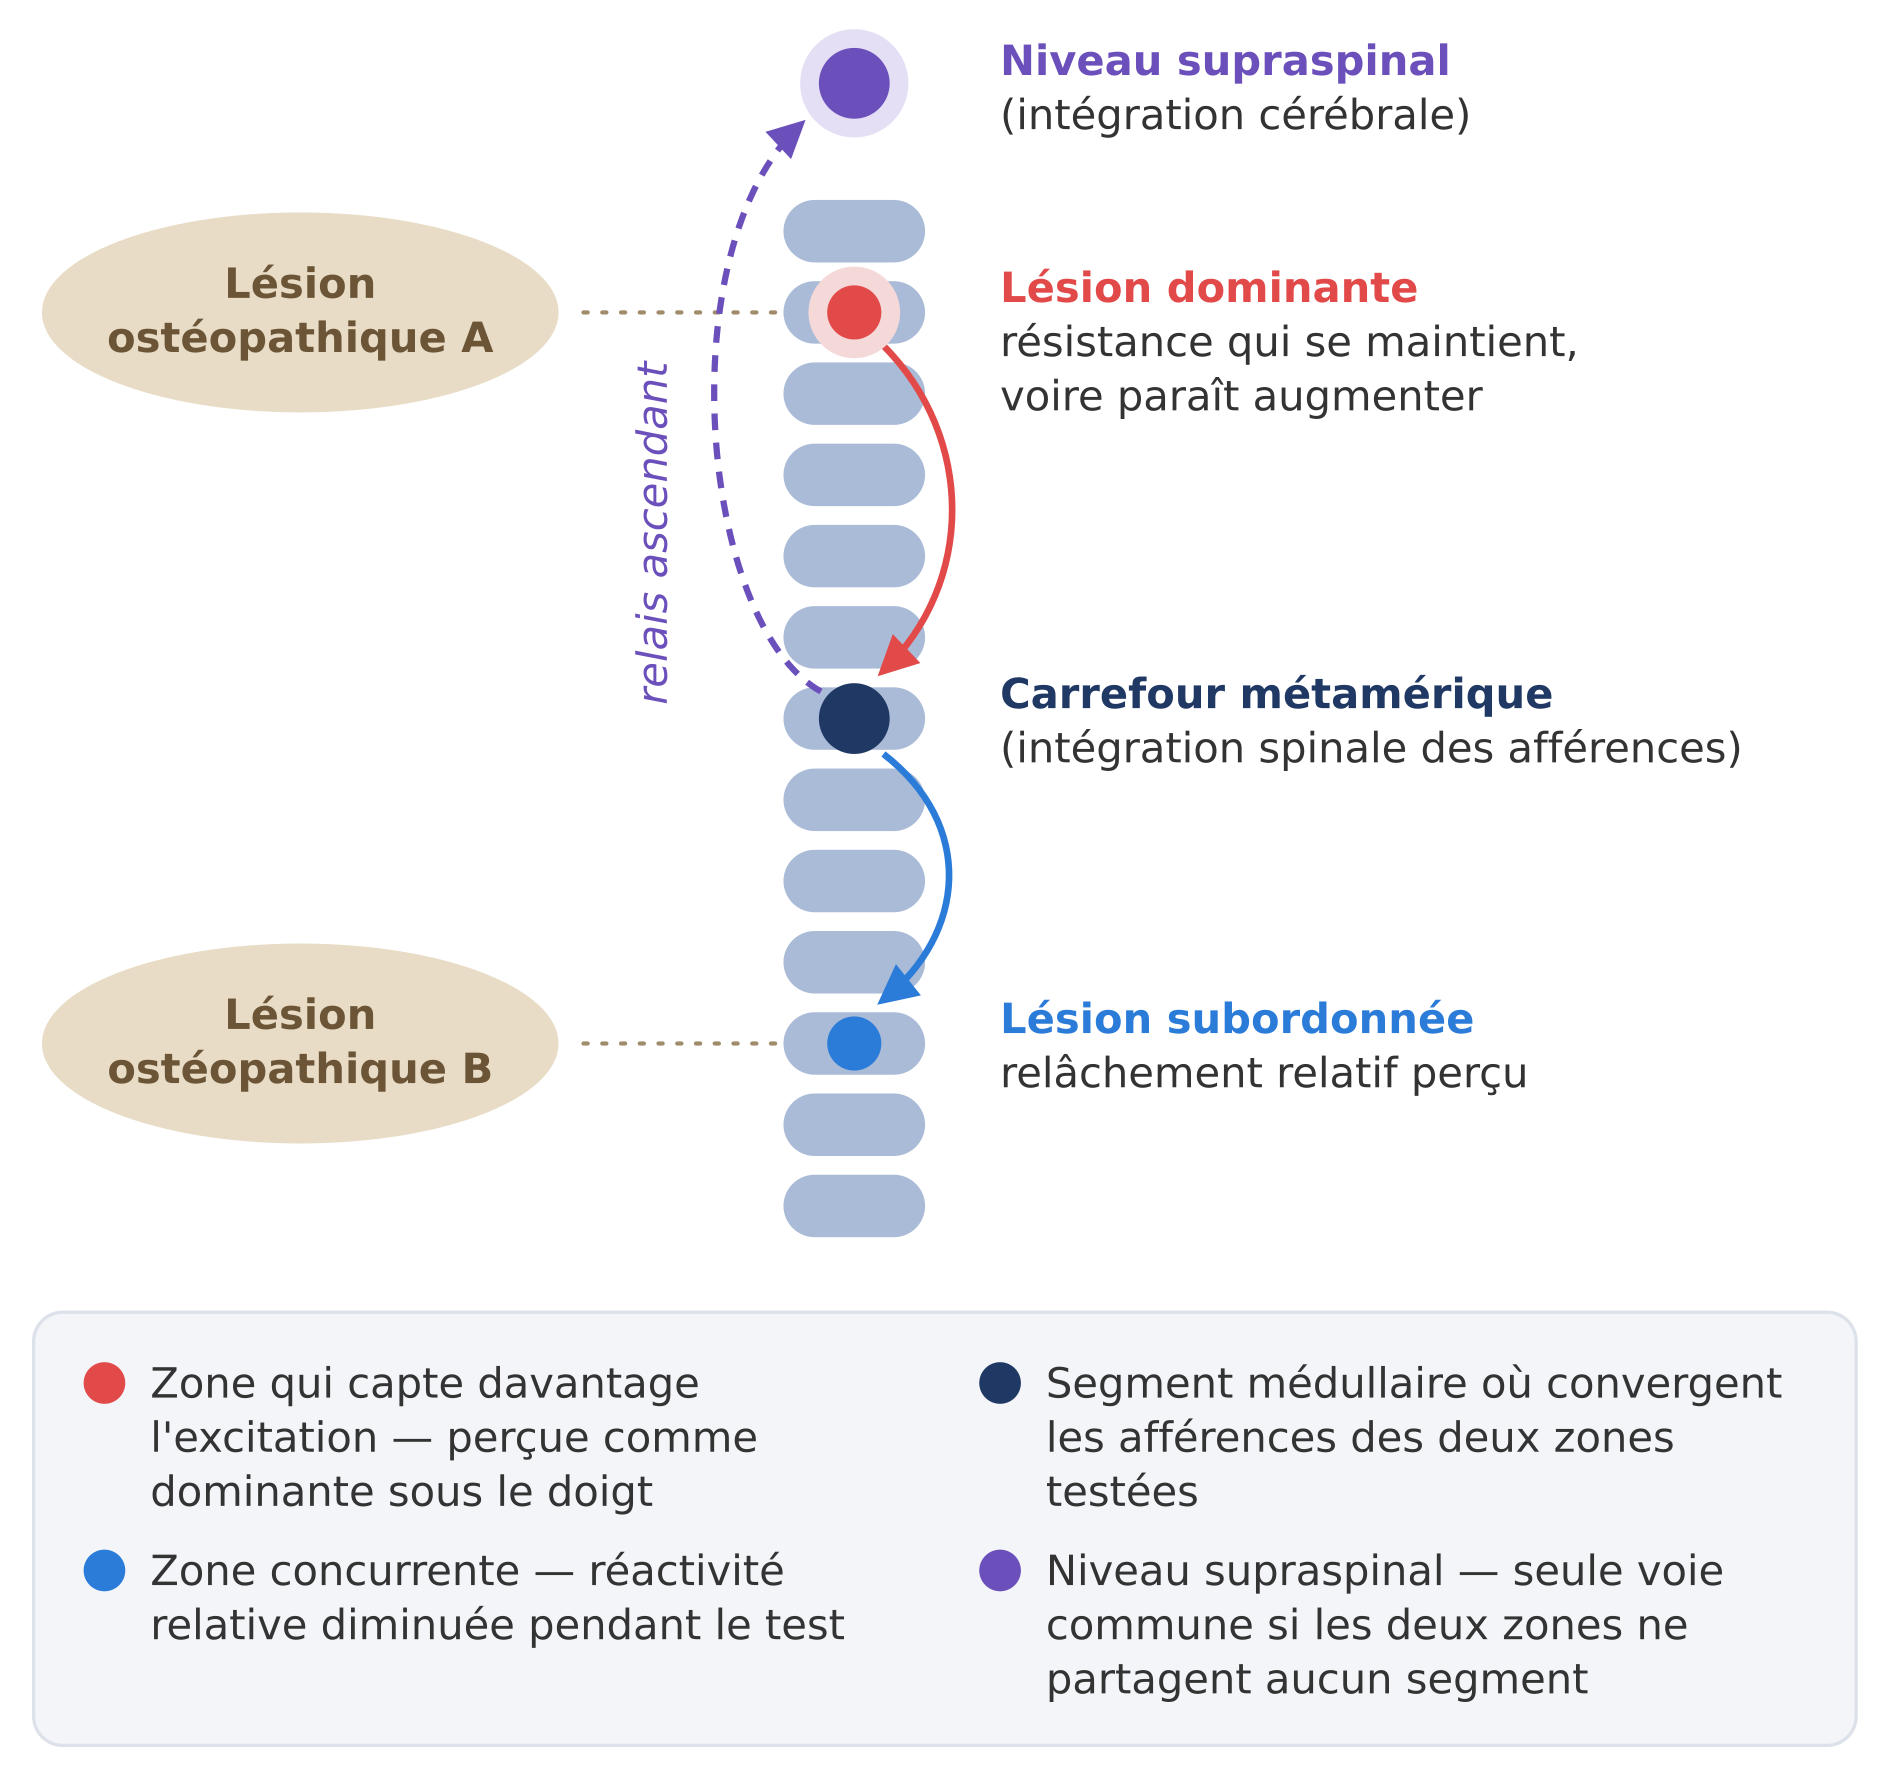
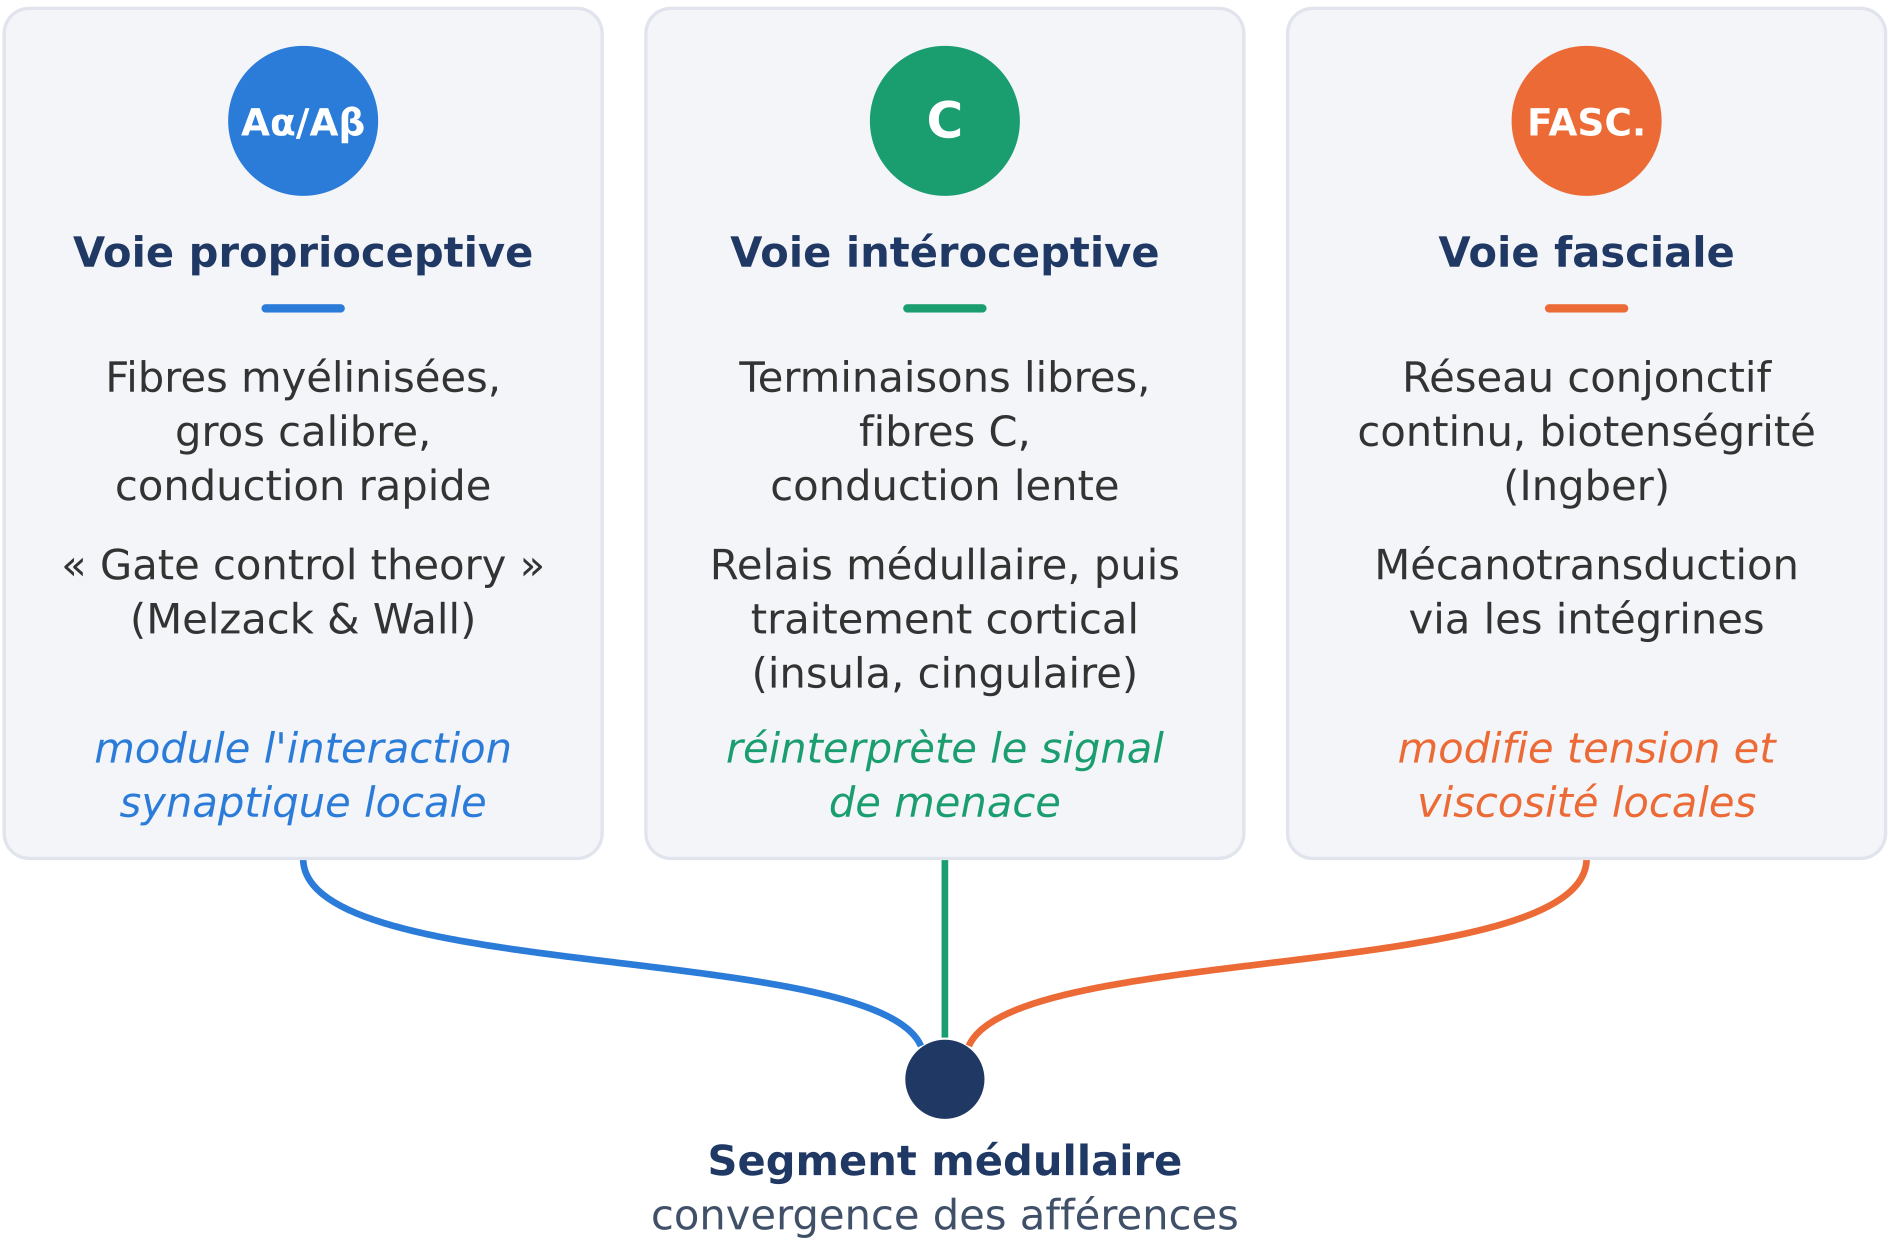
Sur le plan fonctionnel, un même segment médullaire reçoit des afférences sensitives provenant de différents tissus : squelette, muscles, viscères, vaisseaux et peau. Des structures somatiques et viscérales peuvent donc partager des circuits d’intégration médullaire sans avoir la même origine embryologique. Le lien métamérique désigne ici ce partage d’un ou de plusieurs niveaux médullaires de connexion, plutôt qu’une appartenance stricte à un même territoire anatomique. Cette convergence des afférences somatiques et viscérales constitue notamment un substrat des douleurs projetées et des interactions entre ces informations sensitives. Dans le cadre du LMO, elle permet de formuler l’hypothèse qu’une lésion ostéopathique puisse influencer, par les circuits médullaires, la réactivité perçue d’un autre tissu partageant certains de ses niveaux de connexion. Lorsque les deux zones testées ne partagent aucun niveau médullaire — par exemple l’os nasal et la tête radiale —, cette convergence segmentaire ne suffit plus : l’interaction perçue suppose alors l’intervention de niveaux d’intégration supraspinaux.
2. La sensibilisation centrale et le segment facilité
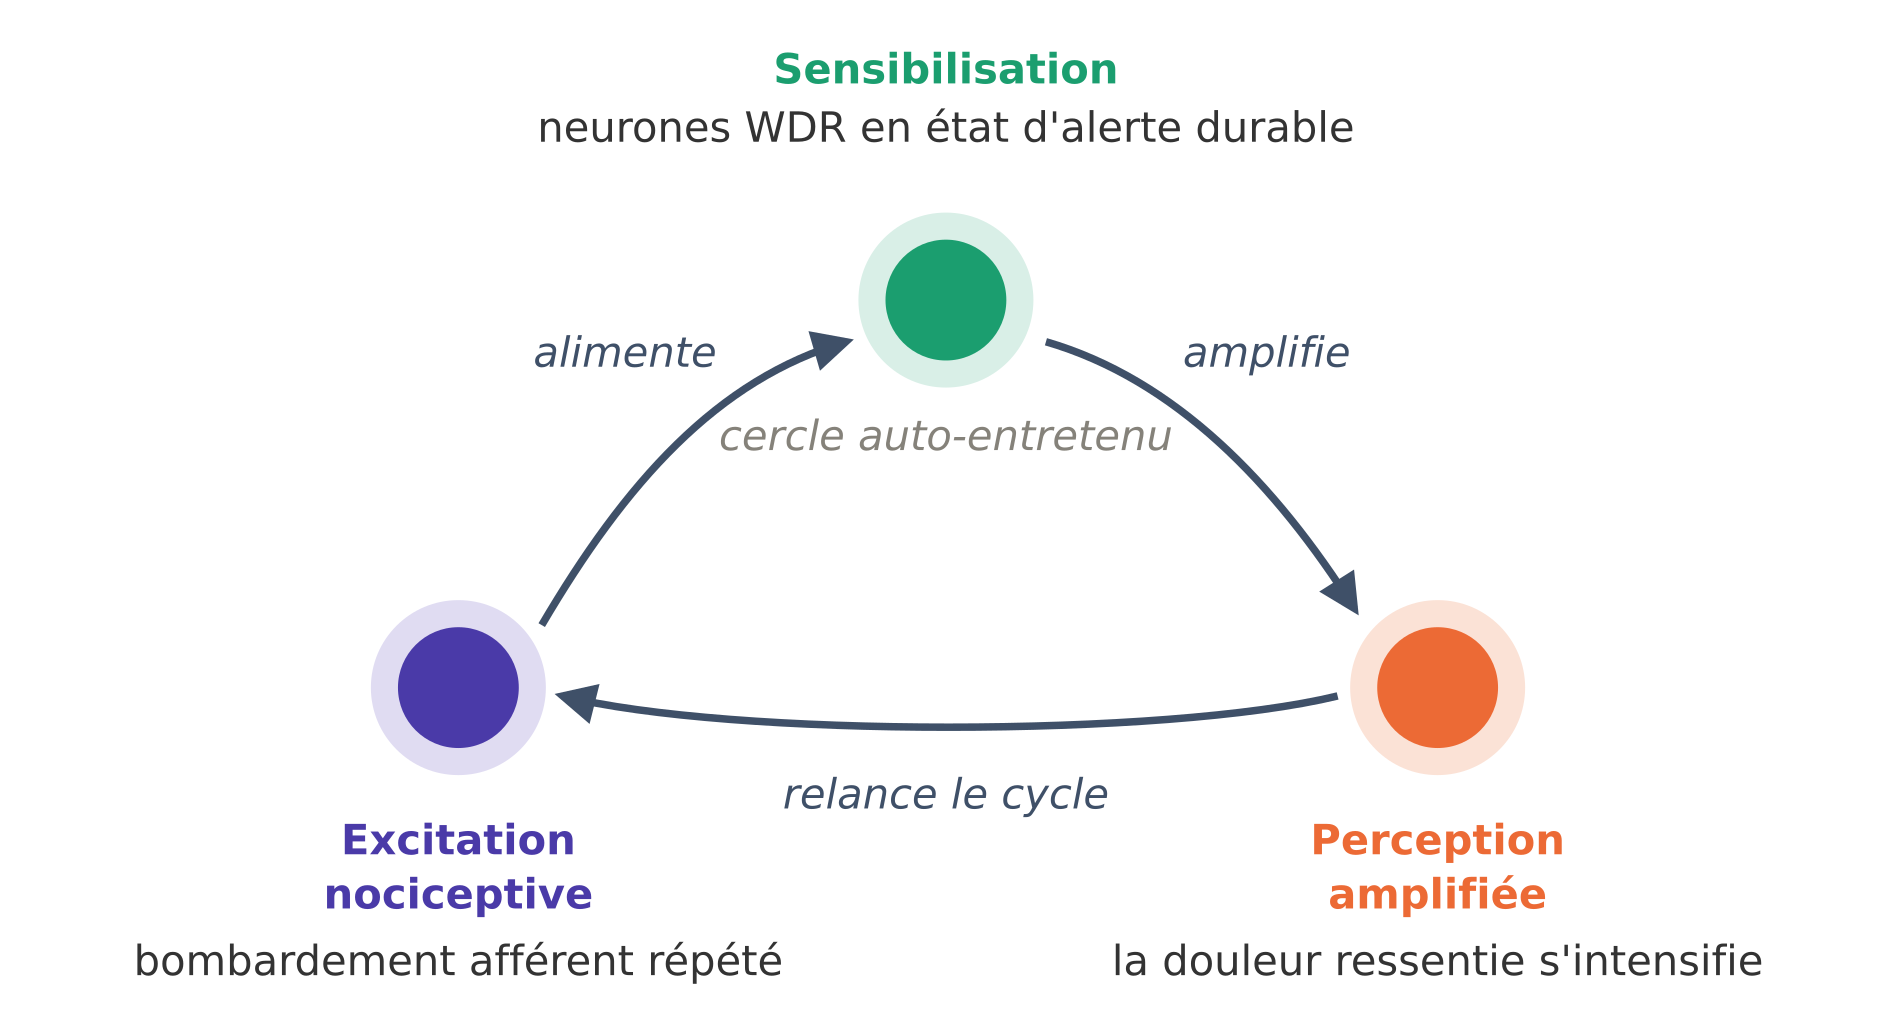
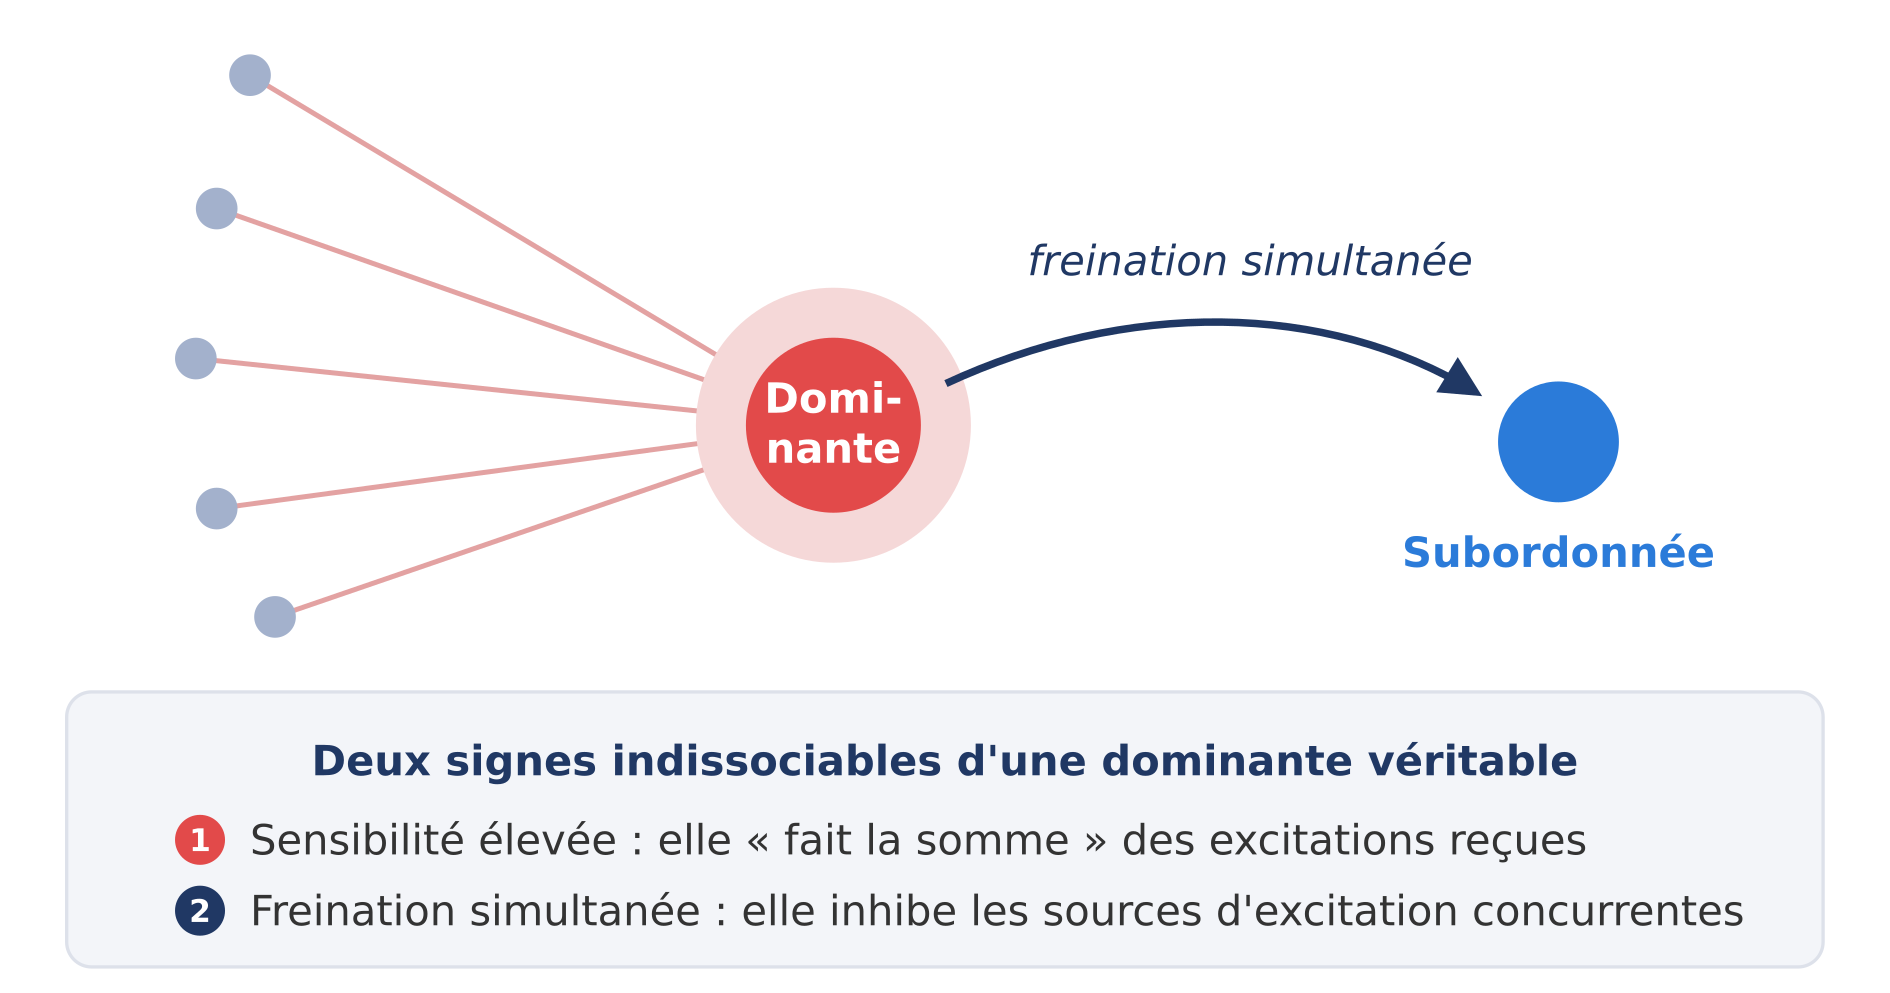
En 1975, Irvin Korr[2] a proposé le modèle du « segment facilité » : un bombardement afférent répété, issu des propriocepteurs d’une zone en dysfonction, abaisserait la « résistance synaptique » du segment médullaire correspondant et faciliterait la transmission des influx vers les effecteurs (muscles, viscères). Van Buskirk[3] a complété ce modèle en 1990 en soulignant le rôle des nocicepteurs et de l’inflammation neurogène consécutive à un stress mécanique, chimique ou thermique.
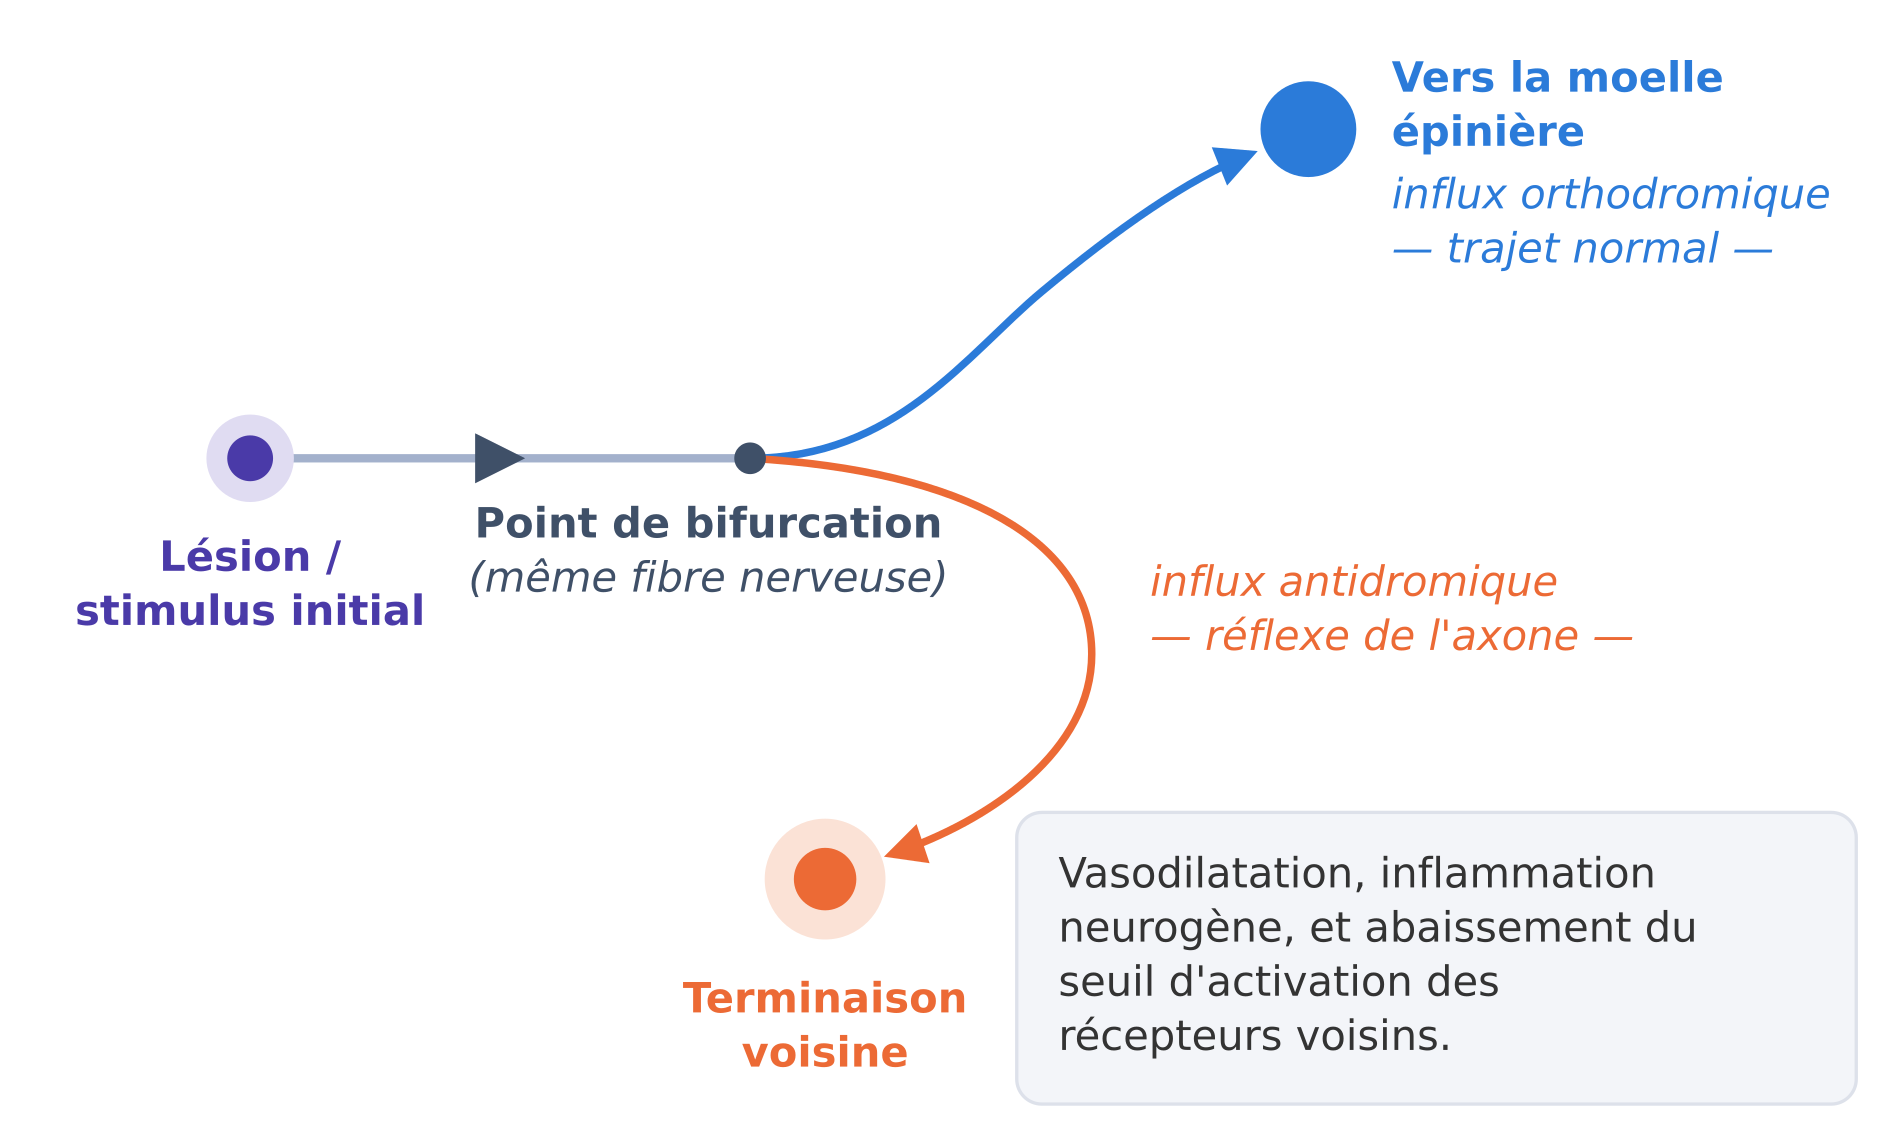
La physiologie de la douleur a depuis précisé ce mécanisme avec le concept de sensibilisation centrale[4]. Les neurones de la corne dorsale dits « à large gamme dynamique » (Wide Dynamic Range, WDR) reçoivent de façon convergente les afférences cutanées, somatiques profondes et viscérales d’un même métamère. Lorsqu’un tissu est lésé ou enflammé, un flux antidromique[5] appelé réflexe de l’axone[6] entretient une inflammation neurogène locale et abaisse le seuil d’activation des récepteurs périphériques (sensibilisation périphérique), à l’origine d’une hyperalgésie, voire d’une allodynie, dans la zone lésée. Ces deux effets ne sont pas contradictoires mais successifs : ce n’est pas l’inflammation elle-même qui a besoin d’être douloureuse à l’instant où elle apparaît, c’est la baisse de seuil qu’elle provoque qui rend les stimulations suivantes plus douloureuses qu’elles ne l’auraient été en temps normal. Après un coup de soleil, la peau devient rouge et chaude — c’est l’inflammation locale — mais ce n’est pas cette rougeur elle-même qui fait mal ; c’est le fait que l’eau tiède de la douche ou le simple contact d’un vêtement, normalement indolores, deviennent douloureux le lendemain, parce que l’inflammation a abaissé le seuil d’activation des récepteurs cutanés environnants : c’est l’allodynie.
[1] Les fascias et les muscles qu’ils enveloppent ne partagent pas nécessairement la même origine embryologique.
[2]Korr IM. « Proprioceptors and somatic dysfunction ». Journal of the American Osteopathic Association, 1975, 74:638-650.
[3]Van Buskirk RL. « Nociceptive reflexes and the somatic dysfunction ». Journal of the American Osteopathic Association, 1990, 90:792-809.
[4]Woolf CJ. « Central sensitization: Implications for the diagnosis and treatment of pain ». Pain, 2011, 152(3 Suppl):S2-S15.
[5] Un influx antidromique se propage en sens inverse du trajet habituel. Dans le réflexe d’axone, il chemine depuis une bifurcation de la fibre sensitive vers des terminaisons périphériques voisines.
[6]Howell JN, Willard F. « Nociception: new understandings and their possible relation to somatic dysfunction and its treatment ». Ohio Research and Clinical Review, 2005, 15:35.